【doc】光,氮及其相互作用对作物碳氮代谢的影响研究进展
电脑杂谈 发布时间:2020-04-27 04:23:49 来源:网络整理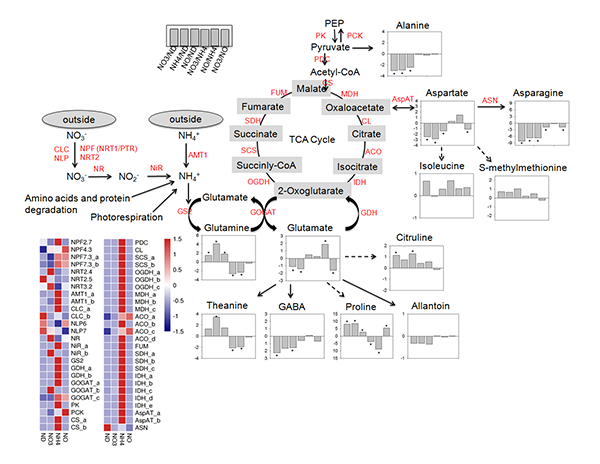
光,氮及其相互作用对作物碳氮代谢的影响研究进展(广东农业科学2006(1. 广东省农业科学院水稻研究所,广东广州510640; 2. 植物科学学院,广东广州510640)华中农业大学科技学院,湖北武汉430070 37)摘要: 在回顾以往研究成果的基础上,探讨了氮和光在作物生长中的作用. 据认为,这主要反映在作物的光合作用和氮素利用方面. ,两个光的相互作用对作物碳氮代谢的影响. 关键词: 光氮;相互作用;光合作用;氮效率碳和氮的代谢儿童文献标识码: A文章编号: 1004—874X(2006)02—0037—04氮与光的相互作用与作物的ph0t0合成性状和碳和氮代谢汪强,钟旭华,黄农荣,郑海波(1.水稻研究所,广东,广东,广东,广东,广东,广东,广东,广东,广东,广东. 华中农业大学植物科学与技术学院,武汉,武汉430070) ,其影响主要在光合作用流量问题,联盟实施,效果,效果,效果
关键字: 光;氮;相互作用;光合作用;氮效率碳和碳的代谢氮,光是影响植物生长的两个重要因素,植物碳,氮的代谢以及光合产物的生产和分配在作物生产中很重要. 植物氮素营养的质量直接影响光合速率和生长发育,最终影响产量和光能利用. 照明是植物光合作用和依赖生长的先决条件. 光照强度对植物叶片的光合速率,蒸腾速率和气孔导度,光饱和点和补偿点有显着影响. 氮的代谢也取决于光,因为氮的还原需要叶子的光合作用系统提供能量. 3J. 作为作物的两个最重要的生长因子,光和氮协同影响植物的物质生产,分布以及碳和氮代谢. 氮和光仅在植物生长期间保持平衡且协调的供应水平,以便发挥二者对作物生长的最佳相互作用效果并确保作物理想生长. 关于氮,已经有许多研究关于一种或两种因素在光的相互作用中对植物生长的影响. 本文基于以前的研究结果. 提交日期: 2005-1219基金项目: 国家自然科学基金重大项目(30390080);广东省自然科学基金项目(04002089)作者简介: 王强(1980 1),男,硕士,电子邮件: wangqiangcn @ 163.
conl通讯作者: 华中旭(1963),男,博士,教授,电子邮件: xzhongl @ pub. 广州+广东cn讨论作物生长过程中氮与光的相互作用. 氮对作物光合作用和碳氮代谢的影响氮不仅是作物营养的三大要素之一,而且还是植物蛋白,核酸,酶,叶绿素和许多内源激素或其先决条件的一部分. 3_3. 氮是植物中最重要的结构性物质,是调节植物生化反应的关键物质-酶及其辅基的合成_4J. 氮是对植物需求最大的矿物质营养元素. 植物叶片氮含量的75%用于构建叶绿体,其中大部分与光合作用有关. 因此,氮缺乏经常成为植物生长的限制因素. 1.1氮与光交互作用对作物碳氮代谢的影响及原因. 在一定的氮肥施用量范围内增加氮肥的施用量可以提高植物的光合作用率和光饱和点,增加叶绿素含量,增加净光合作用率并增加产量,但氮素供应的不平衡将导致产量下降. 在植物中的光合能力[5-8]. 当氮含量超过一定值时,会降低同化率. 主要的生理原因是光合作用位点的氮含量增加,导致氮同化作用增强,从而加剧了对光合碳同化作用的竞争. ATP NADPH(减少的辅酶死亡)降低了coe的同化率.

此内,光合速率与叶片氮含量呈线性关系. 氮对光合作用的影响与叶绿素含量直接相关. 施氮后,叶绿素含量增加,导致叶肉细胞的光合作用活性和叶片的光吸收强度增加. 最终,净光合速率增加. 氮素缺乏会导致作物“绿色缺乏”,叶绿素含量是作物光合能力的重要指标.
Cao Cuiling研究了水培条件下氮对叶绿素含量的影响. 结果表明,在小麦生育期,随着外部氨水供应量的增加,叶绿素a和b的含量增加,光合速率也增加. 李艳明和弗雷德里克的研究结果还表明,增加氮肥的施用量可以增加叶片的叶绿素含量并延长绿叶区域的持续时间[儿,J. Evans研究发现,小麦叶片的固着是仅与叶片中的氮含量有关,而与营养处理,季节和叶龄无关;随着叶片中氮含量的增加,CO2同化率增加,但当氮含量超过125 mmol / lm时,其同化[13]薛庆武等人的研究表明,施氮显着增加了整株植物的叶面积和叶绿素含量;剑叶的净光合速率,L导度和叶肉的光合活性均得到提高. 蔡瑞国等人的研究表明,强筋小麦8901和弱筋小麦1391均显示出氮肥,旗叶中叶绿素含量和生育后期的光合速率增加都有增加的趋势,但是氮肥的过量施用又使氮减少[15j. 高氮必须与高光强度结合在一起,以提高光合机理的光合能力. 在弱光下,由于光的限制,不能发挥氮对光合作用机制的积极作用. 因此,合理施用氮肥有利于提高光能利用率,提高产量. 1.2氮和光相互作用对与碳氮代谢有关的酶的影响水稻光合作用中最大的限制酶是Rubisco,其反应速率仅为每秒2至3次,而酶促反应的一般效率为25,000. ),效率非常低.
Rubisco除固定二氧化碳外,还与02相容. 在光合作用过程中,还会发生光呼吸作用,并且光合作用消耗了16%至50%的光合作用固定碳. 埃文斯研究指出,小麦旗叶的RuBPCase特性与叶片的总氮呈正相关[J. Chem.Soc.Sci. ,2005,2,2,4. 冯福生的研究表明,冬小麦的RuBPCase活性随施氮量的增加而增加,呈非线性关系. 当施氮量大于900kg / hm2时,RuBPCase活性不再增加[【2J. 罗连元等的研究. 结果表明,无论在高光照还是低光照下,低氮处理的植株(香兰)叶片的可溶性蛋白和PPDK酶活性均没有增加或增加很少,只有高氮处理的效果显着增加. YamazakiJ从基因表达的角度进行了研究,指出RuBPCase,PEPCase和PPDK的基因表达首先被光激活,然后由氮决定基因表达的水平. 氮主要从翻译水平影响蛋白质的合成,酶活性增加(在氮条件下较高)是酶蛋白含量增加的结果. 硝酸还原酶作为一种光诱导酶,是氮素代谢过程中重要的调节酶和限速酶,与作物氮素代谢密切相关. 它作为植物体内硝酸同化的限速步骤,催化硝酸还原为[L18]. 在烟草碳氮代谢中,氮的施用量直接与硝酸盐的减少和整个氮代谢的强度有关. 对于含氮化合物的形成,淀粉的积累晚而又小,碳和氮被延迟并且不比快速生长期明显[
在小麦,水稻和玉米的研究中,已证明硝酸盐还原酶的活性随氮肥施用量的增加而增加[11,20J. 李有才等通过对不同棉花品种的研究发现,硝酸还原酶活性高的品种对外部氮肥的吸收利用能力强,生长潜力大. 研究还发现,还报道了其他酶的光合作用系统中的细胞酶,防御系统酶和其他酶的叶绿素含量,光合强度和生理指标(如可溶性糖)和硝酸还原酶活性的趋势. 在氮代谢中. 李先利等人的研究. 表明田文NH4-N的施用可以提高苹果植株的SOD和POD活性,其酶活性随N-N用量的增加而增加. 但是在高铵态氮水平下,POD的活性显示出下降趋势[l2]. Magalhase研究指出,在一定的光照强度下,当N为单一氮源时,水稻的GS活性高于玉米,而番茄顶端分生组织的GS活性更高[22]. 随着N} {4浓度的增加,水稻中GS的活性增加,地上部分高于地上部分. 此外,N} {4可以诱导番茄根中的GOH活力,但不能诱导水稻中的GOH活力. 因此,氮对相关酶的调节与光的强度有关. 光照是作物生长发育的必要条件,对作物形态具有更大的影响. 光强可以调节农作物中许多含氮化合物的合成和利用.
在作物生产中,通常通过增加或减少种植密度来调节光强度. 在研究中,通常通过遮光或在人工气候箱中调节光强度,因此关于光对农作物氮代谢的影响的研究相对较少. 2.1光照强度对农作物氮素吸收利用的影响以及光照强度和氮肥施用量变化的原因,在一定程度上决定了作物的氮素营养状况和氮素的吸收,以及光照强度是不同的氮形式有不同的作用. 曾希柏在人工气候箱中对生菜进行的实验表明,在一定的光照强度范围内,光照较强时,农作物吸收氮的速度更快,氮的吸收量增加,产量较高[3l. 张明用氮进行研究的结果表明,高铁石end在一定的光照强度范围内,高光照条件有利于养分溶液中氮素的吸收和锯末的中等品质,充分利用光能进行光合作用. ,促进生长发育,积累更多的干物质,从而提高产量_2. 赵平认为,在强光条件下,硝酸盐同化的碳消耗量低,有利于硝酸盐的使用. 在弱光条件下,由于呼吸消耗低,因此有利于铵的吸收6. 在强光下,植物的呼吸频率更高,光合作用潜力和光合速率更高,物质生产能力更高,光合产物分配到根系的数量更多,有利于维持根系活力_2,促进氮素的吸收利用. 弱光下根系活力和根长降低,吸收能力降低[26J,氮素吸收较少.
氮的利用率与光强度密切相关,而光合强度影响氮的减少. 在弱光下,碳水化合物供应减少,硝酸盐还原酶活性下降;当光恢复时,酶活性增加. 的还原还取决于光,因为的还原需要叶片光合作用系统产生的能量2. 关义新的实验表明,在较高的光照强度下,玉米幼苗的硝酸盐还原酶活性,谷氨酸脱氢酶活性和可溶性蛋白含量较高,叶片中的硝酸盐含量较低,具有较高的氮同化能力[27J. 2.2光和氮相互作用对碳和氮代谢的影响光强度对作物的光合作用有显着影响. 光是光合作用的能源,是影响光合作用碳循环中光调节酶产生的重要因素,也是叶绿素J形成的必要条件. 沃德研究认为,叶绿素含量的水平是: 中光(350〜moL / s.m2)>高光(1000〜moL / s?M2)>低光(50〜moL / s?M2). 在弱光下生长的叶片的光饱和点和最大光合速率高于弱光下,并且还具有更大的光合作用潜力[28J. 水培玉米幼苗期试验表明,高光强度下的叶面积每单位面积含有更多的叶绿素. 在低光照强度下,聚光器官的大小增加,导致叶绿体中叶绿素含量增加,叶绿素a / b值降低. 在一定光强范围内,光合速率,光饱和点和光补偿点随光强_5J的增加而增加.

在光强小于195t〜mol / s的条件下?平方米,番茄的净光合速率随光强39度的增加而线性增加[28J. 与诸如番茄之类的太阳植物相比,遮荫植物的叶子具有较低的光合作用补偿点和饱和点,这使得它们在深色遮荫下可以正常生长. 当水稻植株暴露于不同程度的弱光下时,净光合速率降低,分till数减少,干物质积累减少,单产下降. 照明是植物体内硝酸盐吸收的必要条件. 照明可通过诱导硝酸还原酶的合成来影响硝酸盐的产生. 在强光下,硝酸盐还原酶,谷氨酸脱氢酶活性和可溶性蛋白质含量较高,并且具有较高的氮同化能力. 关义的新研究指出,高光下玉米适宜的氮水平高于低光下,而低光下植物的材料生产能力和同化能力较高. 作物越强,对氮肥的需求就越大. 强光下植物的可溶性糖和淀粉含量高于弱光下. 两种氮素下可溶性糖的差异随着氮素供应的增加而增加,下降趋势为_5l5. 曾希柏的研究指出,在严重缺乏光照的情况下,施肥不能在很大程度上补偿作物(生菜)的生长变化,而施肥(氮)的作用只能是调节作物的生长. 在l29l条件下建立的土壤和光照生长条件. 综上所述,氮和光这两个重要的生长因子在决定农作物的生长发育中起着重要的作用.
在作物生长发育过程中,在一定的土壤肥力和相对稳定的作物质量和温度条件下,影响作物干物质积累的最重要因素是光照条件. 日照充足时,光合强度大,干物质积累大,农作物吸收更多的肥料,需要更多的肥料. 否则,应少施肥料,否则会导致肥料过多,影响干物质积累. 当前研究的特点和趋势以前的研究表明,硝酸还原酶作为一种光诱导酶,是氮素代谢过程中的重要调节酶和限速酶,与农作物的氮素代谢密切相关. 光的作用首先是调节硝酸盐的还原. 酶活性通过诱导硝酸还原酶的合成来影响硝酸盐的代谢[22],这充分表明氮与光在作物生长中的作用非常接近. 先前的研究集中在氮和光的一个或两个因素上. 以光合作用速率,氮素形态和光合作用产物分布等指标为研究对象,分析了氮和光在植物生长中的作用. 因此,有许多关于这两个因素在作物生长中的作用的报道. 现有的大多数研究都是在生理学水平上进行的,而对蔬菜和烟草的研究更多,并且对光与氮相互作用中酶的理解也逐渐加深. 当前缺乏关于氮和光如何相互作用以实现谷物作物最佳生长的一些研究. 光与氮平衡,氮利用和光强度之间的定量关系尚未见报道. 因此,在田间生产中,要综合考虑或研究氮与光的相互作用对作物生长的影响,并以此来指导合理施肥和提高肥料利用率,以及通过施肥和种植密度合理利用光. 对于理论研究是必要的,但在生产实践中也具有重要的指导意义.
参考文献: [1] WiebelJ,EarthlusD. 叶片(GarciniamangostanaL. )的气体交换特性[J]. 树生理学,1993,13(1): 55-69. [2] ReddyYAN,PrasadTG,KumarMU. 关键词: 高NAR和低NAR Mysour农业科学学报,1995,29(3): 199-203. [3] MaBL,MorrisonK,MaleomJ,eta1. 冠层化学反射和田间绿化-氮肥和玉米产量[J]. 农学学报,1996,88(3): 915-920. [4]张福锁. 环境胁迫与植物营养[M]. 北京: 北京农业大学出版社. 1993: 127—141 [5]关义新,林宝,凌必英.

光氮交互作用对光合色素,荧光特性和玉米叶片能量转换的影响[J]. 植物营养与肥料学报,2000,6(2): 152-158. [6]赵平,孙谷初,彭少林. 植物氮素营养的生理生态学研究[J]. 生态科学,1998,17(2): 37-42. [7]曾希柏,谢德提,青长乐. 氮肥对生菜光合特性影响的研究[J]. 植物营养与肥料,1997,3(4): 323327. [8]曾希柏. 土壤肥力生物热力学及其理论进展[J]. 土壤通报,1996,27(6): 273-276. [9]曹翠玲,李生秀,苗芳. 氮对植物某些生理生化过程影响的研究进展[J]. 西北农业大学学报,1999,27(4): 96-100. [10]曹翠玲,李胜秀. 氮素供应水平对小麦生育期光合速率,NR活性,核酸含量和产量的影响[J]. 植物学通报,2003,20(30): 319-324. [11]李浩奇,连振德,陆桂英. 硝酸还原酶活性与农作物耐性的研究: 水稻叶片中硝酸还原酶活性与施氮量的关系[J]. 植物生理通讯,1985,21(5): 14-16. [12]冯福生,陈文龙,李杰. 不同供氮水平下冬小麦叶片RuBP羧化酶和硝酸还原酶活性的变化[J].
植物生理学通讯,1986,22(6): 20-22. [13] EvansRJ. 关键词: 小麦,旗叶,氮素和光合作用PlantPhysio 1. 1983,72(2): 297-302. 薛庆武,陈沛源. 干旱条件下氮素营养对小麦水分状况和光合作用的影响[J]. 植物生理学,1990. 16(1): 49-56. 蔡瑞国,王振林,李文阳,等. 氮素水平对不同基因型小麦旗叶光合特性及籽粒灌浆过程的影响[J]. 华北农业学报,2004,19(4): 36-41. 罗连元,林志芳. 氮营养对酸磷酸二激酶的调节作用[J]. 植物生理通讯,1992,28(1): 40-42. 山崎M,渡边A,杉山T.氮-Reg-积累光合作用碳素化酶催化酶的mRNA和蛋白质[J]. 植物细胞生理学杂志,1986,27(3): 443-352.
李有才,林振武. 唐玉伟硝酸还原酶研究: 不同棉花品种的硝酸还原酶活性[J]. 作物,1986,12(2): 95-99. 史洪志,韩进峰. 烤烟碳氮代谢若干问题的探讨[J]. 烟草技术,1998,8(2): 34-36. 辛格不同作物对低光照的生理响应[J]. 植物生理学杂志,1994,37(3): 147-151. 李先利,高东升,顾曼茹. 铵态氮和硝态氮对苹果植株SOD和POD活性的影响[J]. 植物生理通讯,1997. 33(4): 254-255. MagalhazeJR. 关键词: 不同植株,氨同化酶,氮,形态,响应植物营养学报,1991,14(2): 175-185. 曾希柏,侯光炯光 氮代谢,青长乐. 土壤-植物系统中光与氮的关系研究[J]. 生态学,2000,20(1): 103-108. 张明,陈世江,万兆亮,等. 光强对金D石absorption吸收氮的影响[J].
西南农业大学,2000,22(2): 108 ll1. 汪艳,米国华,陈繁军等. 玉米根系形态对光和氮水平响应的基因型差异[J]. 土壤肥料,2001,3(3): 12-14. OsakiM,TyodaM,YamadaS,eta1. 互遮光对植物体内碳分布的影响[J]. 土壤科学与植物营养,1995,41(2): 235-244. GreefJM. 不同供氮量下玉米(maysL. )的生产力与形态和生理特性的关系[J]. Journalofmgrono-myandCropSdence,1994,172(5): 317-326. 郭勇李天来环境因素对番茄叶片净光合速率的影响[J]. 沉阳农业大学,1998,29(2): 127-131. 曾希柏,清长乐,谢德ti. 作物生长过程中光与氮肥关系的研究[J]. 土壤,2000,37(3): 380-386.
本文来自电脑杂谈,转载请注明本文网址:
https://www.pc-fly.com/a/ruanjian/article-190333-1.html
-

-
熊鄂
对于su流氓国家
-
石动乃绘
中国还没有宣布这三个新岛的领海基点吧
-
李晓龙
到天亮都招呼不完
-
 笔记本电脑视频打不开怎么办的解决方法
 qq飞车手游版封测申请网址 qq飞车手游版公测申请链接
 华泰证券分析交易系统(通达函件版本)
 万福卡盟?雄心卡盟?带状疱疹偏方|秋燥起 防哮喘_逸晨卡盟
数据呢